Зеленые растения используют для процесса фотосинтеза сколько процентов
Фотосинтез — один из самых важных биологических процессов на Земле. Благодаря фотосинтезу живые организмы получают кислород, необходимый для дыхания, а сами растения создают полезные органические вещества для своей жизнедеятельности. В этой статье мы поговорим о том, что обозначает фотосинтез, как он происходит и что образуется в процессе фотосинтеза.
Что такое фотосинтез
Фотосинтез — процесс, при котором в клетках, содержащих хлорофилл, под действием энергии света образуются органические вещества из неорганических. При фотосинтезе растение поглощает углекислый газ и воду, синтезирует органические вещества и выделяет кислород, как побочный продукт фотосинтеза.
Процессы фотосинтеза идут в тканях, содержащих хлоропласты, — преимущественно, в листе, на который приходится большая часть процессов фотосинтеза. Такая ткань называется хлоренхима, или мезофилл.
Строение хлоропластов
Чтобы понять, что происходит в растении при фотосинтезе, изучим подробнее хлоропласты. Хлоропласты — это особые пластиды растительных клеток, в которых происходит фотосинтез. Основные элементы структурной организации хлоропластов высших растений представлены на рис.1.

Хлоропласт — это двумембранный органоид. Внешняя мембрана проницаема для большинства органических и неорганических соединений. Она содержит специальные транспортные белки, благодаря которым нужные для работы хлоропласта пептиды и другие вещества попадают в него из цитоплазмы. Внутренняя мембрана обладает избирательной проницаемостью и способна контролировать, какие именно вещества попадут во внутреннее пространство хлоропласта.
Для хлоропластов характерна сложная система внутренних мембран, позволяющая пространственно организовать фотосинтетический аппарат, упорядочить и разделить реакции фотосинтеза, несовместимые между собой, и их продукты. Мембраны образуют тилакоиды, которые, в свою очередь, собираются в «стопки» — граны. Пространство внутри тилакоидов называется внутритилакоидным пространством, или люменом.
Внутреннее пространство хлоропласта между гранами заполняет строма — гидрофильный слабоструктурированный матрикс. В строме содержатся необходимые для реакций синтеза сахаров ферменты, а также рибосомы, кольцевая молекула ДНК, крахмальные зёрна.
Пигменты хлоропластов
Что происходит во время фотосинтеза? На молекулярном уровне фотосинтез обеспечивают особые вещества — пигменты, благодаря которым энергия солнечного света становится доступной для биологических систем. У фотосинтезирующих организмов можно выделить три основные группы пигментов:
- Хлорофиллы:
- хлорофилл а — у большинства фотосинтезирующих организмов,
- хлорофилл b — у высших растений и зелёных водорослей,
- хлорофилл c — у бурых водорослей,
- хлорофилл d — у некоторых красных водорослей.
- Каротиноиды:
- каротины — у всех фотосинтезирующих организмов, кроме прокариот;
- ксантофиллы — у всех фотосинтезирующих организмов, кроме прокариот
- Фикобилины — красные и синие пигменты красных водорослей.
В хлоропластах пигменты ассоциированы с белками с помощью ионных, водородных и других типов связей. Не стоит забывать, что у растений есть множество других пигментов, находящихся не в хлоропластах и не принимающих участие в фотосинтезе — например, антоцианы.
Хлорофилл
Хлорофиллы выполняют функции поглощения, преобразования и транспорта энергии света. Лучше всего хлорофиллы поглощают свет в синей (430—460 нм) и красной (650—700 нм) областях спектра. Зелёную область спектра хлорофиллы эффективно отражают, что придаёт растению зелёный цвет.
Интересно, что строение молекулы хлорофилла схоже со строением гемоглобина, но центром молекулы хлорофилла является ион магния, а не железа.
Основными хлорофиллами высших растений являются хлорофилл a и хлорофилл b, они входят в состав реакционных центров фотосистем и светособирающих комплексов мембран тилакоидов хлоропластов. Светособирающие комплексы улавливают кванты света и передают энергию к фотосистемам I и II. Фотосистемы — это пигмент-белковые комплексы, играющие ключевую роль в световой фазе фотосинтеза.
Каротиноиды
Каротиноиды — это жёлтые, оранжевые или красные пигменты. В зелёных листьях каротиноиды обычно незаметны из-за наличия в листьях хлорофилла. При разрушении хлорофилла осенью именно каротиноиды придают листьям характерную жёлто-оранжевую окраску.
- Антенная — входят в состав светособирающих комплексов, улавливают энергию света и передают её на хлорофиллы. Каротиноиды играют роль дополнительных светособирающих пигментов в той части солнечного спектра (450—570 нм), где хлорофиллы малоэффективны. Особенно это важно для водных экосистем, в которых волны оптимальной для хлорофиллов длины быстро исчезают с глубиной.
- Защитная функция (антиоксидантная) — обезвреживание агрессивных кислородных соединений (активных форм кислорода) и избытка хлорофилла в возбуждённом состоянии при слишком ярком освещении.
Каротиноиды химически представляют собой 40-углеродную цепь с двумя углеродными кольцами по краям цепи. В строении ксантофиллов, в отличие от каротинов, присутствуют спиртовые, эфирные или альдегидные группы.
Что происходит в процессе фотосинтеза
Как уже было сказано ранее, в ходе фотосинтеза в хлоропластах под действием солнечного света образуются органические вещества.
Процесс фотосинтеза можно разделить на две фазы:
В ходе световой фазы фотосинтеза образуется энергия в виде АТФ и универсальный донор атома водорода — восстановитель НАДФН (НАДФ·Н2). Эти вещества необходимы для протекания темновой фазы. Также образуется побочный продукт — кислород. Световая фаза может проходить только на мембранах тилакоидов и на свету.
Благодаря сложному биохимическому процессу — циклу Кальвина — в темновую фазу фотосинтеза образуются органические вещества (сахара). Темновая фаза проходит в строме хлоропластов и на свету, и в темноте. Темновые ферментативные процессы протекают медленнее, чем световые, поэтому при очень ярком освещении скорость протекания фотосинтеза будет полностью определяться скоростью темновой фазы. Схемы процессов фотосинтеза представлены на рис.2. Подробное описание процессов смотри далее.

Световая фаза фотосинтеза
Чтобы лучше понять, что происходит во время фотосинтеза, разберём фазы фотосинтеза. Световая фаза фотосинтеза включает в себя фотохимические и фотофизические процессы, и может быть поделена на три этапа:
- Фаза поглощения — энергия света улавливается при помощи светособирающих комплексов, переходит в энергию электронного возбуждения пигментов, передаётся в реакционный центр фотосистем I и II.
- Фаза реакционных центров — энергия электронного возбуждения пигментов светособирающих комплексов используется для активации реакционных центров фотосистем. В реакционном центре электрон от возбуждённого хлорофилла передаётся другим компонентам электрон-транспортной цепи, пигмент после отдачи электрона переходит в окисленное состояние и становится способным, в свою очередь, отнимать электроны у других веществ. Именно в этом процессе происходит преобразование физической формы энергии в химическую.
- Фаза электрон-транспортной цепи — электроны переносятся по цепи переносчиков, образуются АТФ, НАДФН, O2. Необходимо, чтобы каждый переносчик электрон-транспортной цепи поочерёдно восстанавливался и окислялся, обеспечивая таким образом перенос энергии электронов. Любой этап переноса электрона сопровождается высвобождением или поглощением энергии. Часть энергии теряется. На некоторых участках электрон-транспортной цепи перенос электрона сопряжён с переносом протона.
Для того чтобы понять, что происходит во время фазы фотосинтеза, рассмотрим эти процессы подробнее. Кванты света улавливаются светособирающими комплексами фотосистемы I — молекула хлорофилла в составе светособирающего комплекса переходит в возбуждённое состояние, и энергия передаётся в реакционный центр фотосистемы I. Происходит возбуждение молекул хлорофилла фотосистемы I, отщепляется электрон. Пройдя по цепочке внутренних компонентов фотосистемы I и внешних переносчиков, электрон в конце концов попадает к НАДФ+ — образуется восстановитель НАДФН. Получается, что хлорофилл фотосистемы I отдал электрон и приобрёл положительный заряд, и для дальнейшего функционирования необходимо восстановить нейтральность молекулы, получить электрон, чтобы закрыть «дырку». Этот электрон приходит от фотосистемы II.
На светособирающие комплексы фотосистемы II попадают кванты света — происходит возбуждение молекулы хлорофилла фотосистемы II, молекула хлорофилла отдаёт электрон и переходит в окисленное состояние. Нехватку электрона хлорофилл восполняет благодаря фотолизу воды, при этом образуется протоны H+, а также важный побочный продукт фотосинтеза — кислород. По цепи переносчиков электрон от хлорофилла фотосистемы II попадает к хлорофиллу реакционного центра фотосистемы I и восстанавливает его. Теперь этот хлорофилл может снова поглощать энергию кванта света и отдавать электрон в электрон-транспортную цепь.
Протоны, попадающие во внутритилакоидное пространство, используются для синтеза АТФ. С помощью фермента АТФ-синтазы за счёт градиента протонов образуется АТФ из АДФ и фосфата. Под градиентом понимают неравномерное распределение: во внутритилакоидном пространстве H+ больше, в строме — меньше. Поэтому частицы стремятся проникнуть в строму, переходят в неё через АТФ-синтазу, а в процессе пути сквозь белковый комплекс отдают ему часть энергии, которая и используется для синтеза АТФ.
Темновая фаза фотосинтеза
Что образуется при фотосинтезе в темновую фазу? В строме хлоропластов с помощью энергии АТФ и восстановителя НАДФН, полученных в световую фазу, образуются простые сахара, из которых в ходе других процессов образуется крахмал. Ферментативные процессы не нуждаются в наличии света. Важнейший процесс, происходящий в темновую фазу фотосинтеза, — фиксация углекислого газа воздуха. Синтез и превращения сахаров в хлоропластах имеют циклический характер и носят название цикл Кальвина.
В нём можно выделить три этапа:
- Фаза карбоксилирования (введение CO2 в цикл).
- Фаза восстановления (используются АТФ и НАДФН, полученные в световую фазу).
- Фаза регенерации (превращения сахаров).
В строме хлоропластов находится производное простого пятиуглеродного сахара рибозы. С помощью особого фермента (Рубиско) к производному рибозы присоединяется CO2 (реакция карбоксилирования) — образуется неустойчивое шестиуглеродное соединение, которое быстро распадается на две трехуглеродные молекулы. Дальше, с затратой АТФ и НАДФН, полученных в ходе световых процессов, трехуглеродное соединение модифицируется — образуется восстановленное соединение с атомом фосфора и альдегидной группой в составе. Теперь перед клеткой стоит проблема: необходимо получить шестиуглеродное соединение — глюкозу для синтеза крахмала, а также пятиуглеродное — производное рибозы для того, чтобы эти процессы могли начаться заново. Для решения этих проблем в фазу регенерации из полученных ранее трехуглеродных соединений под действием ферментов образуются четырёх-, пяти-, шести- и семиуглеродные сахара. Из шестиуглеродной молекулы образуется глюкоза, из которой синтезируется крахмал. Из пятиуглеродной молекулы образуется производное рибозы и цикл замыкается. Остальные сахара также используются клеткой в других биохимических процессах.
Отдельно стоит сказать про крайне важный фермент первой фазы цикла Кальвина — рибулозо-1,5-дифосфаткарбоксилазу (Рубиско). Это сложный фермент, состоящий из 16 субъединиц, с молекулярной массой в 8 раз больше, чем у гемоглобина. Является одним из важнейших ферментов в природе, поскольку играет центральную роль в основном механизме поступления неорганического углерода (из CO2) в биологический круговорот. Содержание Рубиско в листьях растений очень велико, он считается самым распространённым ферментом на Земле.

Значение фотосинтеза
В процессе фотосинтеза энергия света заключается в энергию химических связей органических веществ. Поэтому фотосинтез служит первичным источником почти всей энергии, используемой живыми организмами в процессе жизнедеятельности. Практически все живые организмы, за исключением хемосинтетиков, так или иначе пользуются теми продуктами, что выделяются при фотосинтезе.
За счёт фотосинтеза сформировалась и поддерживается пригодная для дыхания атмосфера с высоким содержанием кислорода.
Фиксация углекислого газа в ходе фотосинтеза служит главным местом входа неорганического углерода в биогеохимический цикл. Также ассимиляция CO2 препятствует перегреву Земли, предотвращая парниковый эффект.
Заключение
Каждый год на нашей планете благодаря фотосинтезу производится около 200 миллиардов тонн кислорода, из которого образуется озоновый слой, защищающий от ультрафиолетовой радиации. Фотосинтез помогает поддерживать состав атмосферы и препятствует увеличению количества углекислого газа. Без растений и кислорода, который они выделяют в процессе фотосинтеза, жизнь на нашей планете была бы просто невозможна.
Сколько солнечной энергии используют растения при фотосинтезе?
Считается, что на фотосинтез растения используют от 1 до 5% падающего светового излучения (за висит от типа фотосинтеза в данном виде растений в данных условиях). Это та энергия которая усваивается в виде углеводов в растении.
Но при этом не учитывается, что кроме этого около 50% солнечного света идет непосредственно на нагревание планеты и воздуха до тех температур при которых происходит фотосинтез (фотосинтетически активные температуры для большинства растений +10 град. по С). Эту энергию тоже следует учитывать, наверное. Еще часть энергии солнца (до 30% кажется) тратится на испарение воды, в том числе и из устьиц растений (транспирация), что также обеспечивает процессы фотосинтеза.
1. Фотосинтез, его значение. Космическая роль зеленых растений.
Фотосинтез— процесс образования органического вещества из углекислого газа и воды на свету при участии фотосинтетических пигментов (хлорофилл у растений, бактериохлорофилл и бактериородопсин у бактерий)
Значение фотосинтеза в природе:Фотосинтез является основным источником биологической энергии, фотосинтезирующие автотрофы используют её для синтеза органических веществ из неорганических, гетеротрофы существуют за счёт энергии, запасённой автотрофами в виде химических связей, высвобождая её в процессах дыхания и брожения. Энергия получаемая человечеством при сжигании ископаемого топлива (уголь, нефть, природный газ, торф) также является запасённой в процессе фотосинтеза.
Фотосинтез является главным входом неорганического углерода в биологический цикл. Весь свободный кислород атмосферы — биогенного происхождения и является побочным продуктом фотосинтеза. Формирование окислительной атмосферы (кислородная катастрофа) полностью изменило состояние земной поверхности, сделало возможным появление дыхания, а в дальнейшем, после образования озонового слоя, позволило жизни.
Космическая роль зеленых растений:Особая роль в этом отношении принадлежит зеленым растениям, роль, которую К. А. Тимирязев назвал Космической. Она заключается в том, что «зеленое зерно хлорофилла является фокусом, точкой в мировом пространстве, в которую с одного конца притекает энергия солнца, а с другого берут начало все проявления жизни на Земле» Ежегодно на Землю поступает огромное количество энергии солнца (1,26- 1024 кал) , 42% которой отражается в мировое пространство. Используя часть энергии солнечных лучей, зеленые растения утилизируют углекислый газ воздуха в качестве источника углерода в процессе синтеза органических веществ. Но зеленое растение не только получает для себя пищу из неорганической природы, оно, по словам Тимирязева, является посредником между небом и Землей. Энергия, полученная от солнечного луча, аккумулируется в растении и в этом виде вместе с накопленным в его теле органическим веществом поступает в организм других растений или животных, питающихся растительной пищей. Последние в свою очередь служат пищей для других гетеротрофных организмов. Выделяемый в процессе фотосинтеза кислород оказывается необходимым для жизни всех аэробных организмов, которые в процессе дыхания поглощают его из воздуха, одновременно выделяя углекислый газ. Такое постоянное поступление углекислого газа в атмосферу имеет колоссальное значение в круговороте веществ. По приблизительным подсчетам, растительный покров земного шара ежегодно ассимилирует из углекислого газа свыше 140 млрд. т углерода, что примерно составляет 3 г на гектар. Всего в атмосфере содержится около двух тысяч биллионов килограммов углекислого газа, которого не хватило бы и на100 лет, если бы он не поступал в атмосферу и гидросферу в процессе жизнедеятельности организмов.
2. Вид, его критерии. Редкие и исчезающие виды растений и животных, меры их сохранения. Вид — основная структурная единица биологической систематики живых организмов (животных, растений и микроорганизмов); таксономическая, систематическая единица, группа особей с общими морфофизиологическими, биохимическими и поведенческими признаками, способная к взаимному скрещиванию, дающему в ряду поколений плодовитое потомство, закономерно распространённая в пределах определённого ареала и сходно изменяющаяся под влиянием факторов внешней среды.Основные критерии: Морфологический критерий предполагает описание внешних (морфологических) признаков особей, входящих в состав определенного вида. По внешнему виду, размерам и окраске оперения можно, например, легко отличить большого пестрого дятла от зеленого, малого пестрого дятла от желны, большую синицу от хохлатой, длиннохвостой, голубой и от гаички. По внешнему виду побегов и соцветий, размерам и расположению листьев легко различают виды клевера: луговой, ползучий, люпиновый, горный.
Физиологический критерий заключается в сходстве жизненных процессов, в первую очередь в возможности скрещивания между особями одного вида с образованием плодовитого потомства. Между разными видами существует физиологическая изоляция. Например, у многих видов дрозофилы сперма особей чужого вида вызывает иммунологическую реакцию в половых путях самки, что приводит к гибели сперматозоидов. В то же время между некоторыми видами живых организмов скрещивание возможно; при этом могут образовываться плодовитые гибриды (зяблики, канарейки, вороны, зайцы, тополя, ивы и др.)
Географический критерий (географическая определенность вида) основан на том, что каждый вид занимает определенную территорию или акваторию. Иными словами, каждый вид характеризуется определенным географическим ареалом. Многие виды занимают разные ареалы. Но огромное число видов имеет совпадающие (накладывающиеся) или перекрывающиеся ареалы. Кроме того, существуют виды, не имеющие четких границ распространения, а также виды-космополиты, обитающие на огромных пространствах суши или океана. Космополитами являются некоторые обитатели внутренних водоемов — рек и пресноводных озер (виды рдестов, ряски, тростник). Обширный набор космополитов имеется среди сорных и мусорных растений, синантропных животных (виды, обитающие рядом с человеком или его жилищем) — постельный клоп, рыжий таракан, комнатная муха, а также одуванчик лекарственный, ярутка полевая, пастушья сумка и др.
Экологический критерий основан на том, что каждый вид может существовать только в определенных условиях, выполняя соответствующую функцию в определенном биогеоценозе. Иными словами, каждый вид занимает определенную экологическую нишу. Например, лютик едкий произрастает на пойменных лугах, лютик ползучий — по берегам рек и канав, лютик жгучий — на заболоченных местах. Существуют, однако, виды, которые не имеют строгой экологичекой приуроченности. Во-первых, это синан-тропные виды. Во-вторых, это виды, которые находятся под опекой человека: комнатные и культурные растения, домашние животные.
Генетический (цитоморфологический) критерий основан на различии видов по кариотипам, т. е. по числу, форме и размерам хромосом. Для подавляющего большинства видов характерен строго определенный кариотип. Однако и этот критерий не является универсальным. Во-первых, у многих разных видов число хромосом одинаково и форма их сходна. Так, многие виды из семейства бобовых имеют 22 хромосомы (2n = 22). Во-вторых, в пределах одного и того же вида могут встречаться особи с разным числом хромосом, что является результатом геномных мутаций. Например, ива козья имеет диплоидное (38) и тетраплоид-ное (76) число хромосом. У серебристого карася встречаются популяции с набором хромосом 100, 150,200, тогда как нормальное число их равно 50. Таким образом, в случае возникновения полиплоидных или анеушюидных (отсутствие одной хромосомы или появление лишней в геноме) форм на основе генетического критерия нельзя достоверно определить принадлежность особей к конкретному виду
Биохимический критерий позволяет различить виды по биохимическим параметрам (состав и структура определенных белков, нуклеиновых кислот и других веществ). Известно, что синтез определенных высокомолекулярных веществ присущ лишь отдельным группам видов. Например, по способности образовывать и накапливать алкалоиды различаются виды растений в пределах семейств пасленовых, сложноцветных, лилейных, орхидных. Или, к примеру, для двух видов бабочек из рода амата диагностическим признаком является наличие двух ферментов — фосфоглю-комутазы и эстеразы-5. Однако этот критерий не находит широкого применения — он трудоемкий и далеко не универсальный. Существует значительная внутривидовая изменчивость практически всех биохимических показателей вплоть до последовательности аминокислот в молекулах белков и нуклеотидов в отдельных участкахДНК.
Вымирающие виды — биологические виды, которые подвержены угрозе вымиранияиз-за своей критически малой численности либо воздействия определенных факторов окружающей среды. Наиболее всесторонней справочной системой по вопросу охранного статуса видов на Земле является Красная книга МСОП. В ней с учетом как вышеупомянутых общих факторов, так и индивидуальных особенностей, характерных для каждого вида, виды распределены на 9 категорий:
Исчезнувший— вид, который исчез после смерти последнего животного данного вида и особей которых на момент исчезновения не было в неволе. Сюда не относятся животные, вымершие по различным причинам до 1500 года (как, например, динозавры).
Исчезнувший в природе— вид, полностью истреблённый в природе, но сохранённый в неволе.
Находится под критической угрозой — виды, количество особей которых в природе не превышает нескольких сотен.
Находится под угрозой— вид, количество особей которого довольно велико, но в силу определённых причин ещё нельзя сказать, что он не исчезнет в течение нескольких лет.
Уязвимый — многочисленный вид, который, однако, в силу причин (например, вырубки леса) всё ещё в опасности.
Близкий к угрозе вымирания— вид, который практически стоек, но ещё не в безопасности
Находится под небольшой угрозой— вид, который настолько многочислен, что сомнительно, что он самостоятельно попадёт под угрозу вымирания через десятки лет. С 2009 года к этому классу причислены люди.
Сведения недостаточны — виды, численность которых неясна.
Неисследованный — виды, сведения о которых не позволяют даже приблизительно определить угрозу их существования.
Охрана видов:Чаще всего для охраны видов, в случае их небольшого ареала, предпринимается постройка специальных территорий трёх типов — заказник, заповедник или национальный парк. Заказник запрещает охоту в определённые сроки и предназначен для восстановления популяции животных после охоты. Проникновение человека туда свободно, но загрязнять там природу и вырубать леса запрещается. Заповедник запрещает охоту круглый год, в нём не должны быть построены никакие здания, в нём запрещена вырубка лесов и загрязнение природы, а также туда имеют доступ лишь учёные. Национальный парк разрешает допуск туристов и иных посетителей, но также запрещает охоту, загрязнение природы, вырубку лесов и постройку жилых зданий хотя разрешены административные. Размеры у них могут быть разные, причём иногда их границы могут соприкасаться, что может создавать неудобства в охране одного и того же вида, но в разных учреждениях. Для видов, вымерших в природе, но сохранившихся в неволе, существуют специальные питомник, в которых животным дают жить.
1. Вирусы, их строение. Вирусы – возбудители опасных заболеваний. Вирусы — мельчайшие организмы, их размеры колеблются от 12 до 500 нанометров. Мелкие вирусы равны крупным молекулам белка. Вирусы — резко выраженные паразиты клеток. Важнейшими отличительными особенностями вирусов являются следующие отличия:
1. Они содержат в своем составе только один из типов нуклеиновых кислот: либо рибонуклеиновую кислоту (РНК), либо дезоксирибонуклеиновую (ДНК), — а все клеточные организмы, в том числе и самые примитивные бактерии, содержат и ДНК, и РНК одновременно.
2. Не обладают собственным обменом веществ, имеют очень ограниченное число ферментов. Для размножения используют обмен веществ клетки — хозяина, ее ферменты и энергию.
3. Могут существовать только как внутриклеточные паразиты и не размножаются вне клеток тех организмов, в которых паразитируют.
Строение вирусов
Вирусы нельзя увидеть в оптический микроскоп, так как их размеры меньше длины световой волны. Разглядеть их можно лишь с помощью электронного микроскопа.
Вирусы состоят из следующих основных компонентов:
1. Сердцевина — генетический материал (ДНК либо РНК), который несет информацию о нескольких типах белков, необходимых для образования нового вируса.
2. Белковая оболочка, которую называют капсидом (от латинского слова капса — ящик). Она часто построена из идентичных повторяющихся субъединиц — капсомеров. Капсомеры образуют структуры с высокой степенью симметрии.
3. Дополнительная липопротеидная оболочка. Она образована из плазматической мембраны клетки-хозяина и встречается только у сравнительно больших вирусов (грипп, герпес).
Вирусы как возбудитель заболеваний
Вирусы всегда являются паразитами и поэтому вызывают у своих хозяев определенные симптомы того или иного вида заболевания. К серьезным заболеваниям животных можно отнести ящур крупного рогатого скота, рожистое воспаление у свиней, чуму птиц и миксоматоз кроликов. Все эти заболевания вызываются вирусами. Вирусное заражение растений обычно приводит либо к появлению желтых крапинок на листьях (так называемой мозаики листьев), либо к морщинистости или карликовости листьев. Вирусы вызывают и задержку роста растений, что впоследствии приводит к снижению урожая. Ряд серьезных заболеваний вызывают вирусы желтой мозаики турнепса (ВЖМТ), табачной мозаики (ВТМ), карликовой кустистости томатов и бронзовости томатов. Появление полосок на некоторых сортах тюльпанов также обусловлено вирусом, а ведь цветоводы продают эти тюльпаны, выдавая их за особый сорт. Вирусы растений, по-видимому, всегда относятся к РНК-содержащим вирусам.
Способы передачи вирусных болезней
Капельная инфекция– самый обычный способ распространения респираторных заболеваний. При кашле и чихании в воздух выбрасываются миллионы крошечных капелек жидкости (слизи и слюны). Эти капли вместе с находящимися в них живыми микроорганизмами могут вдохнуть другие люди, особенно в местах большого скопления народа, к тому же еще и плохо вентилируемых. Стандартные гигиенические приемы для защиты от капельной инфекции – правильное пользование носовыми платками и проветривание комнат.
Некоторые наиболее известные вирусные заболевания человека
С чем связана различная интенсивность фотосинтеза кратко
Графики интенсивности фотосинтеза. От чего зависит интенсивность фотосинтеза?
Основными внешними факторами, влияющими на интенсивность фотосинтеза, являются освещенность, концентрация диоксида углерода и температура. Если по горизонтальной оси отложить изменение любого из перечисленных факторов, то кривые зависимости интенсивности фотосинтеза от этих факторов будут иметь вид, представленный на рисунке. Сначала при увеличении значения какого-либо из лимитирующих факторов наблюдается линейное увеличение интенсивности фотосинтеза. Затем по мере того, как другой фактор или факторы становятся лимитирующими, происходит замедление интенсивности реакции и ее стабилизация.
В дальнейшем будем предполагать, что меняется лишь один, обсуждаемый, фактор, а остальные имеют оптимальные значения.
Освещенность и фотосинтез
При низкой освещенности интенсивность фотосинтеза возрастает пропорционально увеличению количества падающего света. Постепенно под воздействием других факторов интенсивность фотосинтеза снижается. Освещенность в ясный летний день составляет примерно 100 000 люкс (10 000 фут-кандел), тогда как для нормального процесса фотосинтеза необходима освещенность, равная лишь 10 000 люкс. Поэтому для большинства растений (кроме растений, находящихся в тени) свет не является главным лимитирующим фактором фотосинтеза. Очень высокие значения интенсивности света могут приводить к обесцвечиванию хлорофилла и замедлению реакций фотосинтеза. Вместе с тем растения, постоянно находящиеся в подобных условиях, обычно хорошо к ним адаптированы; например, листья у них покрыты толстой кутикулой или густо опушены.
Концентрация диоксида углерода и фотосинтез
Диоксид углерода используется в темновых реакциях для получения сахара. В нормальных условиях диоксид углерода является основным лимитирующим фактором фотосинтеза. В атмосфере содержится от 0,03 до 0,04% диоксида углерода. Если повысить его содержание в воздухе, то можно добиться увеличения интенсивности фотосинтеза. В течение короткого периода можно поддерживать оптимальную концентрацию, составляющую 0,5%, однако при длительном воздействии такая концентрация становится опасной для растения. Поэтому наиболее благоприятной считается концентрация диоксида углерода, равная примерно 0,1%. Некоторые тепличные культуры, например томаты, выращивают именно в атмосфере, обогащенной диоксидом углерода. В настоящее время большой интерес вызывают растения, способные эффективно удалять диоксид углерода из атмосферы и дающие при этом повышенные урожаи. Такие растения, называемые С4-растения, обсуждаются в соответствующем разделе.

Температура и фотосинтез
Темновые, а в некоторой степени и световые реакции контролируются ферментами, поэтому температура воздуха имеет большое значение. Для растений умеренного климата наиболее благоприятной температурой является температура примерно 25 °С. При повышении температуры на каждые 10 °С скорость реакции удваивается, (вплоть до 35 °С), однако другие данные свидетельствуют о том, что при 25 «С растение развивается лучше.
Концентрация хлорофилла и фотосинтез
Сама по себе концентрация хлорофилла не является фактором, лимитирующим фотосинтез. Важными могут оказаться причины понижения уровня хлорофилла: болезни (мучнистая роса, ржа, вирусные болезни), недостаток микроэлементов, нормальные процессы старения. Когда лист желтеет, говорят, что он стал хлоротичным, а процесс образования желтоватой окраски листьев называется хлорозом. Хлоро-тичные пятна часто являются симптомом болезни или минеральной недостаточности. Некоторые элементы, например железо, магний и азот (последние два непосредственно входят в молекулу хлорофилла), необходимы для образования хлорофилла, поэтому эти элементы особенно важны. Кроме того, растению требуется калий. Еше одной причиной возникновения хлороза является недостаток света, поскольку свет необходим на конечной стадии синтеза хлорофилла.

Специфические ингибиторы и фотосинтез
Если подавить фотосинтез, то растение неминуемо погибнет. На этом была основана разработка различных гербицидов, например ДХММ (дихлорфенилдиметилмочевина). Данный препарат запускает обходной путь нециклического потока электронов в хлоропластах, ингибируя таким образом световые реакции. ДХММ сыграла важную роль в изучении световых реакций фотосинтеза.
Еше два фактора оказывают большое влияние на рост сельскохозяйственных культур и имеют более общее значение для роста растения и процесса фотосинтеза — это наличие воды и загрязнение окружающей среды.
Вода и фотосинтез
Вода представляет собой исходное вещество для фотосинтеза. Однако поскольку вода влияет на огромное число клеточных процессов, оценить ее непосредственное влияние на фотосинтез невозможно. Тем не менее, изучая количество синтезируемого органического вещества у растений, страдающих от недостатка воды, можно видеть, что временное увядание приводит к резкому снижению урожая. Даже если у растений не наблюдается видимых изменений, незначительный дефицит воды приводит к значительному падению урожая. Причины этого сложны и не до конца изучены. Одной из явных причин можно считать закрывание устьиц при увядании, что препятствует поступлению углекислого газа для фотосинтеза. Кроме того, было показано, что при недостатке воды в листьях некоторых растений накапливается абсцизовая кислота, являющаяся ингибитором роста.
Загрязнение окружающей среды и фотосинтез
Некоторые газы промышленного происхождения, например озон и диоксид серы, даже в небольших количествах очень опасны для листьев растений, хотя точные причины этого до сих пор не установлены. Так, зерновые культуры в загрязненных районах теряют до 15% своей массы, особенно во время засушливого лета. Оказалось, что лишайники очень чувствительны к диоксиду серы. Сажа забивает устьица и уменьшает прозрачность эпидермиса листа.
Информация на сайте подлежит консультации лечащим врачом и не заменяет очной консультации с ним.
См. подробнее в пользовательском соглашении.
Влияние температуры на фотосинтез находится в зависимости от интенсивности освещения. При низкой освещенности фотосинтез от температуры не зависит (Q10 = 1). Следовательно, при низком уровне освещенности фотосинтез идет с одинаковой скоростью при 15° и 25°С. Это связано с тем, что при низкой освещенности интенсивность фотосинтеза лимитируется скоростью световых реакций. Напротив, при высокой освещенности скорость фотосинтеза определяется протеканием темновых реакций. В этом случае влияние температуры проявляется очень отчетливо и температурный коэффициент Q10 может быть около двух. Так, для подсолнечника повышение температуры в интервале от 9 до 19°С увеличивает интенсивность фотосинтеза в 2,5 раза. Повышение температуры может вызвать также закрытие устьичных щелей. Наконец, как уже говорилось, повышение температуры увеличивает интенсивность дыхания, и в этой связи видимый фотосинтез (разность между фотосинтезом и дыханием) уменьшается. Понижение температуры также снижает фотосинтез, поскольку тормозится активность ферментов.

Зеленый лист – источник жизни на нашей планете. Если бы не зеленые растения, на Земле не было бы ни животных, ни людей. Так или иначе, растения служат источником пищи для всего животного мира.
Человек использует энергию не только солнечных лучей, падающих на землю сейчас, но и тех, что падали на нее десятки и сотни миллионов лет назад. Ведь и уголь, и нефть, и торф – химически измененные остатки растений и животных, живших в те далекие времена.
В последние десятилетия к проблеме фотосинтеза приковано внимание ведущих специалистов ряда отраслей естествознания, ее различные аспекты всесторонне и глубоко исследуются во многих лабораториях мира. Интерес определяется прежде всего тем, что фотосинтез составляет основу энергообмена всей биосферы.
Интенсивность фотосинтеза зависит от многих факторов. Интенсивность света, необходимая для наибольшей эффективности фотосинтеза, у различных растений различна. У теневыносливых растений максимум активности фотосинтеза достигается примерно при половине полного солнечного освещения, а у светолюбивых растений – почти при полном солнечном освещении.
У многих теневыносливых растений не развивается палисадная (столбчатая) паренхима в листьях, и имеется только губчатая (ландыш, копытень). Кроме того, эти растения имеют более крупные листья и более крупные хлоропласты.
Также на интенсивность фотосинтеза влияет температура окружающей среды. Наибольшая интенсивность фотосинтеза наблюдается при температуре 20–28 °С. При дальнейшем повышении температуры интенсивность фотосинтеза падает, а интенсивность дыхания возрастает. Когда интенсивности фотосинтеза и дыхания совпадают, говорят о компенсационном пункте.
Компенсационный пункт изменяется в зависимости от интенсивности света, повышения и понижения температуры. Например, у холодостойких бурых морских водорослей он соответствует температуре около 10 °С. Температура влияет, в первую очередь, на хлоропласты, у которых в зависимости от температуры изменяется структура, что хорошо видно в электронном микроскопе.
Очень большое значение для фотосинтеза имеет содержание углекислого газа в окружающем растение воздухе. Средняя концентрация углекислоты в воздухе составляет 0,03% (по объему). Понижение содержания углекислого газа неблагоприятно влияет на урожай, а его повышение, например до 0,04% может повысить урожай почти в 2 раза. Более значительное повышение концентрации вредно для многих растений: например, при содержании углекислого газа около 0,1% растения томатов заболевают, у них начинают скручиваться листья. В оранжереях и теплицах можно повысить содержание углекислого газа, выпуская его из специальных баллонов или давая испаряться сухой углекислоте.
Свет разных длин волн также по-разному влияет на интенсивность фотосинтеза. Впервые интенсивность фотосинтеза в различных лучах спектра исследовал физик В. Добени, показавший в 1836г., что скорость фотосинтеза в зеленом листе зависит от характера лучей. Методические погрешности при проведении эксперимента привели его к неправильным выводам. Ученый поместил отрезок побега элодеи в пробирку с водой срезом вверх, освещал пробирку, пропуская солнечный свет через цветные стекла или окрашенные растворы, и учитывал интенсивность фотосинтеза по количеству пузырьков кислорода, отрывающихся с поверхности среза за единицу времени. Добени пришел к выводу, что интенсивность фотосинтеза пропорциональна яркости света, а наиболее яркими лучами в то время считались желтые. Этой же точки зрения придерживался и Джон Дрепер (1811–1882), который изучал интенсивность фотосинтеза в различных лучах спектра, испускаемых спектроскопом.
Роль хлорофилла в процессе фотосинтеза доказал выдающийся российский ботаник и физиолог растений К.А. Тимирязев. Проведя в 1871–1875 гг. серию опытов, он установил, что зеленые растения наиболее интенсивно поглощают лучи красной и синей части солнечного спектра, а не желтые, как это считалось до него. Поглощая красную и синюю часть спектра, хлорофилл отражает зеленые лучи, из-за чего и кажется зеленым.
На основании этих данных немецкий физиолог растений Теодор Вильгельм Энгельман в 1883 г. разработал бактериальный метод изучения ассимиляции углекислого газа растениями.

Он предположил, что если поместить в каплю воды клетку зеленого растения вместе с аэробными бактериями и осветить их разноокрашенными лучами, то бактерии должны концентрироваться у тех участков клетки, в которых сильнее всего разлагается углекислый газ и выделяется кислород. Чтобы проверить это, Энгельман несколько усовершенствовал световой микроскоп, укрепив над зеркальцем призму, которая разлагала солнечный свет на отдельные составляющие спектра. В качестве зеленого растения Энгельман использовал зеленую водоросль спирогиру, крупные клетки которой содержат длинные спиральные хроматофоры.
Поместив в каплю воды на предметном стекле кусочек водоросли, Энгельман внес туда же немного аэробных бактерий, после чего, рассмотрел препарат под микроскопом. Оказалось, что в отсутствии призмы приготовленный препарат освещался ровным белым светом, и бактерии равномерно распределялись вдоль всего участка водоросли. В присутствии призмы отраженный от зеркальца луч света преломлялся, освещая участок водоросли под микроскопом светом с разной длиной волны. Спустя несколько минут, бактерии сконцентрировались на тех участках, которые были освещены красным и синим светом. На основании этого Энгельман сделал вывод о том, что разложение углекислого газа, (а, значит, и выделение кислорода) у зеленых растений наблюдается в дополнительных к основной окраске (т.е. зеленой) лучах – красных и синих.

Данные, полученные на современном оборудовании, полностью подтверждают результаты, полученные Энгельманом более 120 лет назад.
Поглощенная хлорофиллом световая энергия принимает участие в реакциях первого и второго этапов фотосинтеза; реакции третьего этапа являются темновыми, т.е. происходит без участия света. Измерения показали, что процесс восстановления одной молекулы кислорода требует минимум восьми квантов световой энергии. Таким образом, максимальный квантовый выход фотосинтеза, т.е. число молекул кислорода, соответствующее одному кванту поглощенной растением световой энергии, составляет 1/8, или 12,5%.
Р.Эмерсон с сотрудниками определили квантовый выход фотосинтеза при освещении растений монохроматическим светом различной длины волны. При этом установлено, что выход остается постоянным на уровне 12% в большей части видимого спектра, но резко снижается вблизи дальней красной области. Это снижение у зеленых растений начинается при длине волны 680 нм. При длине больше 660 нм свет поглощает только хлорофилл a; хлорофилл b имеет максимум поглощения света при 650 нм, а при 680 нм практически свет не поглощает. При длине волны больше, чем 680 нм, квантовый выход фотосинтеза может быть доведен до максимальной величины 12% при условии, что растение одновременно будет освещаться также светом с длиной волны 650 нм. Иначе говоря, если свет, поглощаемым хлорофиллом а дополняется светом, поглощаемый хлорофиллом b, то квантовый выход фотосинтеза достигает нормальной величины.
Усиление интенсивности фотосинтеза при одновременном освещении растения двумя лучами монохроматического света различной длины волны по сравнению с его интенсивностью, наблюдаемой при раздельном освещении этими же лучами, получило название эффекта Эмерсона. Опыты с различными комбинациями дальнего красного света и света с более короткой длиной волны над зелеными, красными, синезелеными и бурыми водорослями показали, что наибольшее усиление фотосинтеза наблюдается в том случае, если второй луч с более короткой длиной волны поглощается вспомогательнымих пигментами.

У зеленых растений такими вспомогательными пигментами являются каротиноиды и хлорофилл b, у красных водорослей – каротиноиды и фикоэритрин, у синезеленых – каротиноиды и фикоцианин, у бурых водорослей – каротиноиды и фукоксантин.
Дальнейшее изучение процесса фотосинтеза привело к заключению, что вспомогательные пигменты передают от 80 до 100% поглощенной ими световой энергии хлорофиллу а. Таким образом, хлорофилл а аккумулирует световую энергию, поглощаемую растительной клеткой, и затем использует ее в фотохимических реакциях фотосинтеза.
Позже было обнаружено, что хлорофилл а присутствует в живой клетке в виде форм с различными спектрами поглощения и различными фотохимическими функциями. Одна форма хлорофилла а, максимум поглощения у которой соответствует длине волны 700 нм, принадлежит к пигментной системе, получившей название фотосистема I, вторая форма хлорофилла а с максимумом поглощения 680 нм, принадлежит к фотосистеме II.
Итак, в растениях была открыта фотоактивная пигментная система, особенно сильно поглощающая свет в красной области спектра. Она начинает действовать уже при ничтожной освещенности. Кроме того, известна и другая регуляторная система, которая избирательно поглощает и использует для фотосинтеза синий цвет. Эта система работает при достаточно сильном свете.
Установлено также, что фотосинтетический аппарат одних растений в значительной степени использует для фотосинтеза красный свет, других – синий.
Для определения интенсивности фотосинтеза водных растений можно использовать метод подсчета пузырьков кислорода. На свету в листьях происходит процесс фотосинтеза, продуктом которого является кислород, накапливающийся в межклетниках. При срезании стебля избыток газа начинает выделяться с поверхности среза в виде непрерывного тока пузырьков, быстрота образования которых зависит от интенсивности фотосинтеза. Данный метод не отличается большой точностью, но зато прост и дает наглядное представление о зависимости процесса фотосинтеза от внешних условий.
Опыт 1. Зависимость продуктивности фотосинтеза от интенсивности света
Материалы и оборудование: элодея; водные растворы NaHCO3, (NH4)2CO3 или минеральная вода; отстоявшаяся водопроводная вода; стеклянная палочка; нитки; ножницы; электролампа мощностью 200 Вт; часы; термометр.
1. Для опыта отбирали здоровые побеги элодеи длиной около 8 см интенсивного зеленого цвета с неповрежденной верхушкой. Их подрезали под водой, привязывали ниткой к стеклянной палочке и опускали верхушкой вниз в стакан с водой комнатной температуры (температура воды должна оставаться постоянной).
2. Для опыта брали отстоявшуюся водопроводную воду, обогащенную СО2 добавлением NaHCO3 или (NH4)2CO3, или минеральную воду, и выставляли стакан с водным растением на яркий свет. Наблюдали за появлением пузырьков воздуха из среза растения.
3. Когда ток пузырьков становился равномерным, подсчитывали количество пузырьков, выделившихся за 1 мин. Подсчет проводили 3 раза с перерывом в 1 мин, данные записывали в таблицу, определяли средний результат.
4. Стакан с растением удаляли от источника света на 50–60 см и повторяли действия, указанные в п. 3.
5. Результаты опытов сравнивали и делали вывод о различной интенсивности фотосинтеза на ярком и слабом свету.
Результаты опытов представлены в таблице 1.
Вывод: при использованных интенсивностях света интенсивность фотосинтеза увеличивается с ростом интенсивности света, т.е. чем больше света, тем лучше идет фотосинтез.
Таблица 1. Зависимость фотосинтеза от интенсивности света
Фотосинтез зависит от множества факторов, которые определяют его интенсивность и продуктивность. На интенсивность процесса фотосинтеза влияют следующие условия: освещение, температура, содержание СО2 в воздухе, снабжение водой, кислородом, минеральное питание, содержание хлорофилла, возраст ассимилирующего органа, степень открытости устьиц. В естественной обстановке все факторы взаимодействуют друг с другом, т.е. действие одного фактора зависит от напряженности всех остальных.
В ясный солнечный день на 1 дм 2 листовой поверхности за 1 ч падает около 30 168 кДж. Из этого количества поглощается примерно 75%, или 22 626 кДж, 25% падающей энергии проходят через лист и отражаются от него (рис.11).
На фотосинтез расходуется 1,5-2% поглощенной энергии.
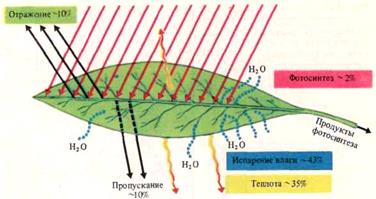
Рис. 11. Примерный энергетический баланс листа растения
Суточные ритмы фотосинтеза можно представить в виде кривой (рис.12):
Рис. 12. Суточный ход интенсивности фотосинтеза
С восходом солнца интенсивность фотосинтеза возрастает вместе с освященностью, достигая максимумов в 9-10 ч. Дальнейший характер процесса определяется степенью оводненности листьев, температурой воздуха, интенсивностью солнечного света, содержанием СО2 в воздухе и т.д.
В нормальных для фотосинтеза условиях процесс протекает неравномерно в течение дня. Утром, к 9-10 ч, наблюдается наиболее интенсивный фотосинтез, затем к 12 часам по мере накопления крахмала и уменьшения количества воды в листьях интенсивность снижается и опять возрастает ко второй половине дня – к 17-18 ч.
Свет. Если расположить факторы, от которых зависит фотосинтез, по их значению, на первое место следует поставить свет. В целом зависимость фотосинтеза от интенсивности освещения может быть выражена логарифмической кривой (рис.13).
Первоначально увеличение интенсивности освещения приводит к пропорциональному усилению фотосинтеза (зона максимального эффекта). При дальнейшем увеличении интенсивности света фотосинтез продолжает расти, но медленнее (зона ослабленного эффекта). И, наконец, интенсивность света растет, а фотосинтез не изменяется (зона отсутствия эффекта).
Наклон кривых, выражающих зависимость интенсивности фотосинтеза от освещенности, различен для разных растений. Есть растения, у которых фотосинтез возрастает вплоть до освещения их прямыми лучами.

Рис.13. Зависимость интенсивности фотосинтеза от освещения у кукурузы
Вместе с тем для многих растений увеличение интенсивности освещения свыше 50% от прямого солнечного света оказывается излишним. Это связано с тем, что конечный выход продуктов фотосинтеза зависит от скорости не столько световых, сколько темновых реакций.
Температура. Общая зависимость фотосинтеза от температуры выражается одновершинной кривой (рис.14). Кривая имеет три основные (кардинальные) температурные точки: минимальную, при которой начинается фотосинтез, оптимальную и максимальную. Нижняя температурная граница фотосинтеза у растений северных широт находится в пределах -15°С (сосна, ель), а у тропических растений – в зоне низких положительных температур – 4-8°С. У растений умеренного пояса в интервале 20-25°С достигается максимальная интенсивность фотосинтеза, а дальнейшее повышение температуры до 40°С приводит к быстрому ингибированию процесса.
Влияние на интенсивность фотосинтеза света, концентрации СО2 и температуры осуществляется в сложном взаимодействии. Особенно тесно взаимосвязаны свет, действующий на скорость фотохимических реакций, и температура, контролирующая скорость энзиматических реакций (рис.15).
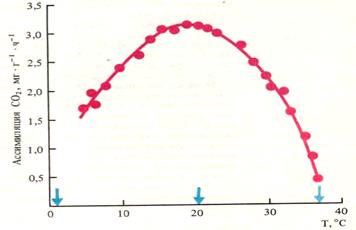
Рис. 14. Зависимость интенсивности фотосинтеза ели от температуры
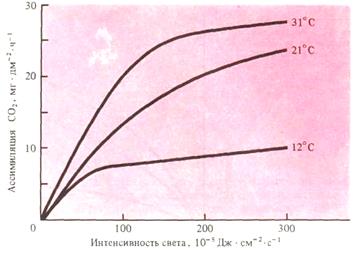 |
Рис.15. Взаимовлияние интенсивности света и температуры на скорость фотосинтеза
СО2. Основным субстратом фотосинтеза является СО2: его содержание определяет интенсивность процесса. Концентрация СО2 в атмосфере составляет 0,03%. Процесс фотосинтеза осуществляется при содержании СО2 не менее 0,008%. Повышение содержания СО2 до 1,5% вызывает прямо пропорциональное возрастание интенсивности процесса фотосинтеза. При повышении содержания СО2 свыше 1,5% фотосинтез продолжает расти, но уже значительно медленнее. При увеличении содержания СО2 до 15-20% процесс фотосинтеза выходит на плато (отсутствие эффекта). При содержании СО2 выше 70% наступает депрессия фотосинтеза (рис. 16).
Рис. 16. Зависимость интенсивности фотосинтеза от концентрации СО2
Взаимовлияние концентрации СО2 и интенсивности света на скорость фотосинтеза показано на рисунке 17.
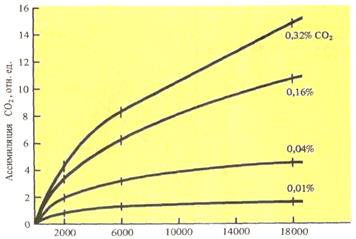 |
Рис.17. Взаимовлияние концентрации СО2 и интенсивности света на скорость фотосинтеза
Водный фактов имеет первоочередное значение для нормального осуществления фотосинтетических функций растений. Значение воды в фотосинтезе обусловливается ее участием в фотохимических и энзиматических реакциях. От степени оводненности тканей растения зависит поглощение энергии солнечной радиации, поступление и ассимиляция углекислого газа, направленность ферментативных реакций, интенсивность транспирации и т.д. Водный дефицит приводит к снижению интенсивности фотосинтеза, которое связано с закрыванием устьиц, что уменьшает диффузию СО2 в лист, к ингибированию циклического и нециклического транспорта электронов и фотофосфорилирования, к снижению активности ферментов, участвующих в темновой фазе фотосинтеза.
Минеральное питание. Для нормального функционирования фотосинтетического аппарата растение должно быть обеспечено всем комплексом макро- и микроэлементов. Два основных процесса питания растительного организма — воздушный и корневой – тесно взаимосвязаны. Многие соединения, функционирующие как переносчики, содержат такие элементы как железо (цитохромы, ферредоксин), медь (пластоцианин). Хлорофилл содержит магний. При недостатке этих элементов интенсивность фотосинтеза понижается.
На интенсивность процесса фотосинтеза влияют и внутренние факторы: содержание хлорофилла, возраст ассимилирующего органа, степень открытости устьиц.
Содержание хлорофилла. Интенсивность фотосинтеза возрастает с увеличением содержания хлорофилла. Содержание хлорофилла и интенсивность освещения можно рассматривать как единый фактор, определяющий поглощение света. При высокой интенсивности света даже сравнительно небольшое количество хлорофилла может поглощать его достаточно, для того чтобы было достигнуто световое насыщение.
Отток ассимилятов. Депрессия фотосинтеза часто связана с нарушением оттока ассимилятов.При нарушении оттока ассимилятов, продукты фотосинтеза (конечные или промежуточные) переполняют клетки и препятствуют их новообразованию, а также они блокируют некоторые ферменты фотосинтетического цикла.
Возраст листа. По мере роста листьев интенсивность фотосинтеза повышается. Наибольшая интенсивность характерна для вполне сформировавшихся листьев. По мере дальнейшего увеличения возраста листьев интенсивность фотосинтеза падает. На интенсивность фотосинтеза оказывает влияние возраст всего растения. У большинства однолетних растений интенсивность фотосинтеза возрастает в процессе онтогенеза и достигает максимума в фазу бутонизации и цветения. После цветения интенсивность фотосинтеза в листьях снижается.
Степень открытости устьиц. В том случае, если содержание воды поддерживается в листе на достаточно высоком уровне, увеличение ширины устьичных щелей, как правило, сопровождается увеличением интенсивности фотосинтеза. При полном закрытии устьиц фотосинтез протекает, но в очень слабой степени.
Влияние внешних и внутренних факторов на интенсивность фотосинтеза можно представить в виде схемы (рис. 18).
Рис.18. Влияние внешних и внутренних факторов на интенсивность фотосинтеза
Фотосинтез зависит от множества факторов, которые определяют его интенсивность и продуктивность. На интенсивность процесса фотосинтеза влияют следующие условия: освещение, температура, содержание СО2 в воздухе, снабжение водой, кислородом, минеральное питание, содержание хлорофилла, возраст ассимилирующего органа, степень открытости устьиц. В естественной обстановке все факторы взаимодействуют друг с другом, т.е. действие одного фактора зависит от напряженности всех остальных.
В ясный солнечный день на 1 дм 2 листовой поверхности за 1 ч падает около 30 168 кДж. Из этого количества поглощается примерно 75%, или 22 626 кДж, 25% падающей энергии проходят через лист и отражаются от него (рис.11).
На фотосинтез расходуется 1,5-2% поглощенной энергии.
Рис. 11. Примерный энергетический баланс листа растения
Суточные ритмы фотосинтеза можно представить в виде кривой (рис.12):
Рис. 12. Суточный ход интенсивности фотосинтеза
С восходом солнца интенсивность фотосинтеза возрастает вместе с освященностью, достигая максимумов в 9-10 ч. Дальнейший характер процесса определяется степенью оводненности листьев, температурой воздуха, интенсивностью солнечного света, содержанием СО2 в воздухе и т.д.
В нормальных для фотосинтеза условиях процесс протекает неравномерно в течение дня. Утром, к 9-10 ч, наблюдается наиболее интенсивный фотосинтез, затем к 12 часам по мере накопления крахмала и уменьшения количества воды в листьях интенсивность снижается и опять возрастает ко второй половине дня – к 17-18 ч.
Свет. Если расположить факторы, от которых зависит фотосинтез, по их значению, на первое место следует поставить свет. В целом зависимость фотосинтеза от интенсивности освещения может быть выражена логарифмической кривой (рис.13).
Первоначально увеличение интенсивности освещения приводит к пропорциональному усилению фотосинтеза (зона максимального эффекта). При дальнейшем увеличении интенсивности света фотосинтез продолжает расти, но медленнее (зона ослабленного эффекта). И, наконец, интенсивность света растет, а фотосинтез не изменяется (зона отсутствия эффекта).
Наклон кривых, выражающих зависимость интенсивности фотосинтеза от освещенности, различен для разных растений. Есть растения, у которых фотосинтез возрастает вплоть до освещения их прямыми лучами.
Рис.13. Зависимость интенсивности фотосинтеза от освещения у кукурузы
Вместе с тем для многих растений увеличение интенсивности освещения свыше 50% от прямого солнечного света оказывается излишним. Это связано с тем, что конечный выход продуктов фотосинтеза зависит от скорости не столько световых, сколько темновых реакций.
Температура. Общая зависимость фотосинтеза от температуры выражается одновершинной кривой (рис.14). Кривая имеет три основные (кардинальные) температурные точки: минимальную, при которой начинается фотосинтез, оптимальную и максимальную. Нижняя температурная граница фотосинтеза у растений северных широт находится в пределах -15°С (сосна, ель), а у тропических растений – в зоне низких положительных температур – 4-8°С. У растений умеренного пояса в интервале 20-25°С достигается максимальная интенсивность фотосинтеза, а дальнейшее повышение температуры до 40°С приводит к быстрому ингибированию процесса.
Влияние на интенсивность фотосинтеза света, концентрации СО2 и температуры осуществляется в сложном взаимодействии. Особенно тесно взаимосвязаны свет, действующий на скорость фотохимических реакций, и температура, контролирующая скорость энзиматических реакций (рис.15).
Рис. 14. Зависимость интенсивности фотосинтеза ели от температуры
|
Рис.15. Взаимовлияние интенсивности света и температуры на скорость фотосинтеза
СО2. Основным субстратом фотосинтеза является СО2: его содержание определяет интенсивность процесса. Концентрация СО2 в атмосфере составляет 0,03%. Процесс фотосинтеза осуществляется при содержании СО2 не менее 0,008%. Повышение содержания СО2 до 1,5% вызывает прямо пропорциональное возрастание интенсивности процесса фотосинтеза. При повышении содержания СО2 свыше 1,5% фотосинтез продолжает расти, но уже значительно медленнее. При увеличении содержания СО2 до 15-20% процесс фотосинтеза выходит на плато (отсутствие эффекта). При содержании СО2 выше 70% наступает депрессия фотосинтеза (рис. 16).
Рис. 16. Зависимость интенсивности фотосинтеза от концентрации СО2
Взаимовлияние концентрации СО2 и интенсивности света на скорость фотосинтеза показано на рисунке 17.
|
Рис.17. Взаимовлияние концентрации СО2 и интенсивности света на скорость фотосинтеза
Водный фактов имеет первоочередное значение для нормального осуществления фотосинтетических функций растений. Значение воды в фотосинтезе обусловливается ее участием в фотохимических и энзиматических реакциях. От степени оводненности тканей растения зависит поглощение энергии солнечной радиации, поступление и ассимиляция углекислого газа, направленность ферментативных реакций, интенсивность транспирации и т.д. Водный дефицит приводит к снижению интенсивности фотосинтеза, которое связано с закрыванием устьиц, что уменьшает диффузию СО2 в лист, к ингибированию циклического и нециклического транспорта электронов и фотофосфорилирования, к снижению активности ферментов, участвующих в темновой фазе фотосинтеза.
Минеральное питание. Для нормального функционирования фотосинтетического аппарата растение должно быть обеспечено всем комплексом макро- и микроэлементов. Два основных процесса питания растительного организма — воздушный и корневой – тесно взаимосвязаны. Многие соединения, функционирующие как переносчики, содержат такие элементы как железо (цитохромы, ферредоксин), медь (пластоцианин). Хлорофилл содержит магний. При недостатке этих элементов интенсивность фотосинтеза понижается.
На интенсивность процесса фотосинтеза влияют и внутренние факторы: содержание хлорофилла, возраст ассимилирующего органа, степень открытости устьиц.
Содержание хлорофилла. Интенсивность фотосинтеза возрастает с увеличением содержания хлорофилла. Содержание хлорофилла и интенсивность освещения можно рассматривать как единый фактор, определяющий поглощение света. При высокой интенсивности света даже сравнительно небольшое количество хлорофилла может поглощать его достаточно, для того чтобы было достигнуто световое насыщение.
Отток ассимилятов. Депрессия фотосинтеза часто связана с нарушением оттока ассимилятов.При нарушении оттока ассимилятов, продукты фотосинтеза (конечные или промежуточные) переполняют клетки и препятствуют их новообразованию, а также они блокируют некоторые ферменты фотосинтетического цикла.
Возраст листа. По мере роста листьев интенсивность фотосинтеза повышается. Наибольшая интенсивность характерна для вполне сформировавшихся листьев. По мере дальнейшего увеличения возраста листьев интенсивность фотосинтеза падает. На интенсивность фотосинтеза оказывает влияние возраст всего растения. У большинства однолетних растений интенсивность фотосинтеза возрастает в процессе онтогенеза и достигает максимума в фазу бутонизации и цветения. После цветения интенсивность фотосинтеза в листьях снижается.
Степень открытости устьиц. В том случае, если содержание воды поддерживается в листе на достаточно высоком уровне, увеличение ширины устьичных щелей, как правило, сопровождается увеличением интенсивности фотосинтеза. При полном закрытии устьиц фотосинтез протекает, но в очень слабой степени.
Влияние внешних и внутренних факторов на интенсивность фотосинтеза можно представить в виде схемы (рис. 18).
Рис.18. Влияние внешних и внутренних факторов на интенсивность фотосинтеза